RNA Interference:
miRNA, siRNA, dan lncRNA
 Beranda
Bramadi Arya, S.Si., M.Biotech
Biologi Molekuler II · Pertemuan 4
Program Studi S1 Ilmu Biomedis
Universitas Syedza Saintika
Sasaran pertemuan
Pertemuan 4 · Mekanisme RNA non-koding dalam regulasi ekspresi gen
Sub-CPMK 4: menjelaskan peran RNA interference (miRNA, siRNA, lncRNA) dalam regulasi ekspresi gen.
Alur pertemuan
- Sejarah singkat: dari cacing ke Nobel
- Biogenesis miRNA langkah demi langkah
- Argonaute, pemilihan untai, dan pengenalan target
- Bagaimana miRNA dan siRNA membungkam gen
- RNAi sebagai alat riset: desain dan kontrol
- lncRNA dan circRNA
- Aplikasi: biomarker sirkulasi dan obat siRNA
Dari cacing ke Nobel
- 1993: gen lin-4 pada C. elegans tidak menyandi protein, melainkan RNA kecil yang menekan lin-14 lewat 3’ UTR (Lee, Feinbaum, Ambros)
- 1998: RNA untai ganda membungkam gen jauh lebih kuat daripada untai tunggal; dinamai RNA interference (Fire et al.)
- 2001: siRNA 21 nukleotida membungkam gen pada sel mamalia (Elbashir et al.)
- Nobel 2006: Fire dan Mello, untuk RNAi
- Nobel 2024: Ambros dan Ruvkun, untuk penemuan mikroRNA
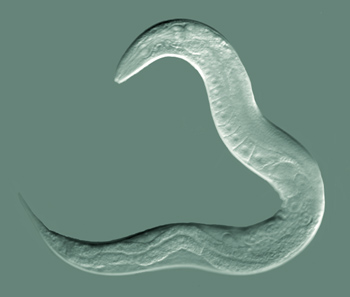
![Cacing Caenorhabditis elegans]()
Caenorhabditis elegans, organisme model tempat miRNA dan RNAi ditemukan. Sumber: Wikimedia Commons.
Peta RNA non-koding pengatur
| miRNA |
sekitar 22 nt |
Jepit rambut endogen |
AGO1 sampai AGO4 |
Menekan banyak mRNA lewat pasangan parsial |
| siRNA |
21 sampai 23 nt |
dsRNA panjang, virus, sintetik |
AGO2 |
Memotong mRNA komplementer penuh |
| piRNA |
24 sampai 31 nt |
Klaster piRNA, sel germinal |
Protein PIWI |
Membungkam transposon |
| lncRNA |
lebih dari 200 nt |
Transkrip Pol II |
Beragam |
Perancah, pemandu, umpan, sinyal |
| circRNA |
beragam |
Back-splicing ekson |
Beragam |
Sebagian menjadi spons miRNA |
Biogenesis miRNA: di dalam inti
1. Transkripsi
Gen miRNA ditranskripsi RNA Pol II menjadi pri-miRNA: panjang, ber-cap, ber-ekor poli-A, mengandung jepit rambut.
2. Pemotongan oleh Mikroprosesor
Kompleks Drosha dan DGCR8 memotong pangkal jepit rambut, menghasilkan pre-miRNA sekitar 60 sampai 70 nt dengan overhang 2 nt di ujung 3’.
3. Ekspor
Exportin-5 bersama RanGTP mengenali overhang 2 nt dan membawa pre-miRNA ke sitoplasma.
Overhang 2 nt adalah tanda pengenal yang dipakai berulang: oleh Exportin-5, lalu oleh Dicer.
Biogenesis miRNA: di sitoplasma
4. Pemotongan oleh Dicer
Dicer (bersama TRBP) mengukur jarak dari ujung pre-miRNA dan memotong lengkungnya, menghasilkan dupleks sekitar 22 nt.
5. Pemuatan ke Argonaute
Dupleks dimuat ke AGO dengan bantuan pendamping HSC70/HSP90, membentuk RISC.
6. Pemilihan untai
- Untai dengan ujung 5’ kurang stabil berpasangan cenderung menjadi untai pemandu
- Domain MID pada AGO lebih menyukai nukleotida 5’ U atau A
- Untai penumpang dibuang dan didegradasi
Jalur non-kanonik: mirtron melewati Drosha lewat splicing; miR-451 melewati Dicer dan dipotong AGO2.
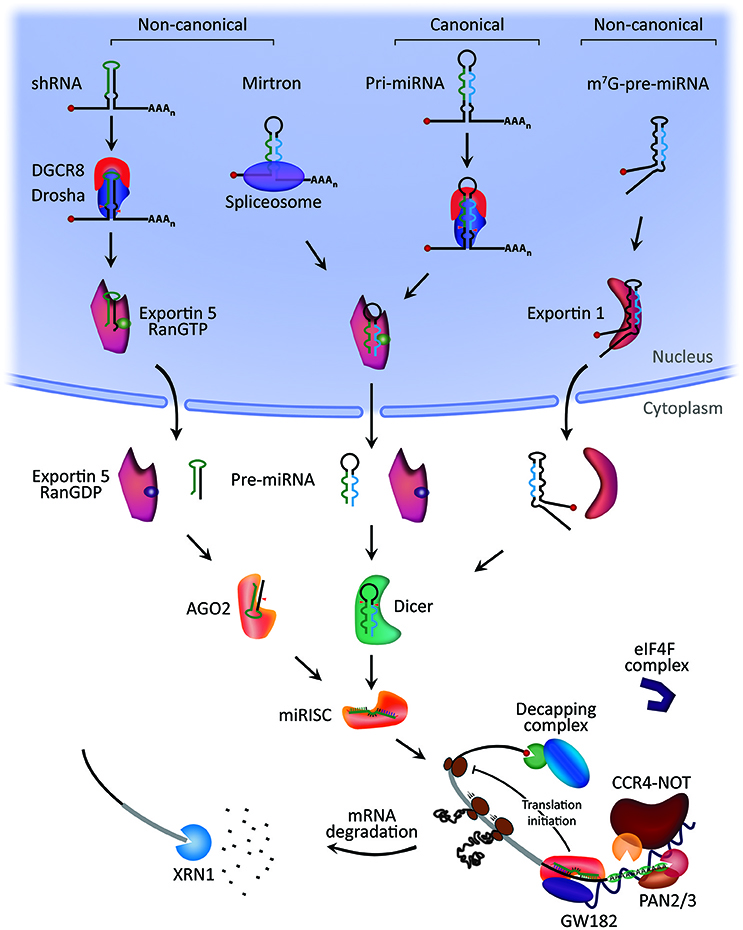
Figur: biogenesis dan mekanisme kerja miRNA
![Biogenesis miRNA kanonik dan non-kanonik serta pembungkaman target]()
Jalur kanonik dan non-kanonik biogenesis miRNA hingga pembungkaman mRNA target. O’Brien J, et al. (2018) Front Endocrinol 9:402, Fig. 1. CC BY 4.0.
Argonaute: jantung RISC
Protein AGO memiliki empat domain utama:
- PAZ: memegang ujung 3’ untai pemandu
- MID: mengikat ujung 5’ terfosforilasi untai pemandu
- PIWI: mirip RNase H; pada AGO2 menjadi gunting (slicer)
- N: membantu membuka dupleks saat pemuatan
Manusia punya AGO1 sampai AGO4, tetapi hanya AGO2 yang memiliki aktivitas slicer kuat. AGO2 memotong mRNA target di antara nukleotida 10 dan 11 dihitung dari ujung 5’ pemandu.
Pengenalan target: wilayah seed
- Seed: nukleotida 2 sampai 8 dari ujung 5’ miRNA, penentu utama pengenalan target
- Situs target umumnya berada di 3’ UTR mRNA
| 8mer |
Seed 2 sampai 8 cocok, ditambah A di seberang posisi 1 |
Terkuat |
| 7mer-m8 |
Seed 2 sampai 8 cocok |
Kuat |
| 7mer-A1 |
Seed 2 sampai 7 cocok, ditambah A di posisi 1 |
Sedang |
| 6mer |
Seed 2 sampai 7 saja |
Lemah |
Karena seed hanya sekitar 7 nukleotida, satu miRNA dapat mengatur ratusan mRNA, dan sebagian besar gen penyandi protein manusia diperkirakan menjadi target miRNA (Bartel, 2018).
Bagaimana miRNA membungkam gen
Setelah AGO menempel di 3’ UTR:
- AGO merekrut protein GW182 (TNRC6)
- GW182 merekrut deadenilase PAN2-PAN3 dan CCR4-NOT
- Ekor poli-A dipendekkan, lalu cap dilepas (DCP1-DCP2)
- mRNA didegradasi dari ujung 5’ oleh XRN1
- Sebagian kecil efek berupa penghambatan inisiasi translasi
Pada sel mamalia, sebagian besar penurunan protein akibat miRNA berasal dari destabilisasi mRNA (Guo et al., 2010). Implikasinya: efek miRNA umumnya sudah terukur dengan RT-qPCR.
siRNA: pemotongan yang presisi
- dsRNA panjang dipotong Dicer menjadi dupleks 21 sampai 23 nt, atau siRNA sintetik dimasukkan langsung
- Dupleks dimuat ke AGO2, untai penumpang dibuang
- Untai pemandu mencari mRNA yang komplementer penuh
- AGO2 memotong mRNA di tengah dupleks (antara nt 10 dan 11)
- Fragmen dihancurkan eksonuklease; RISC dipakai ulang secara katalitik
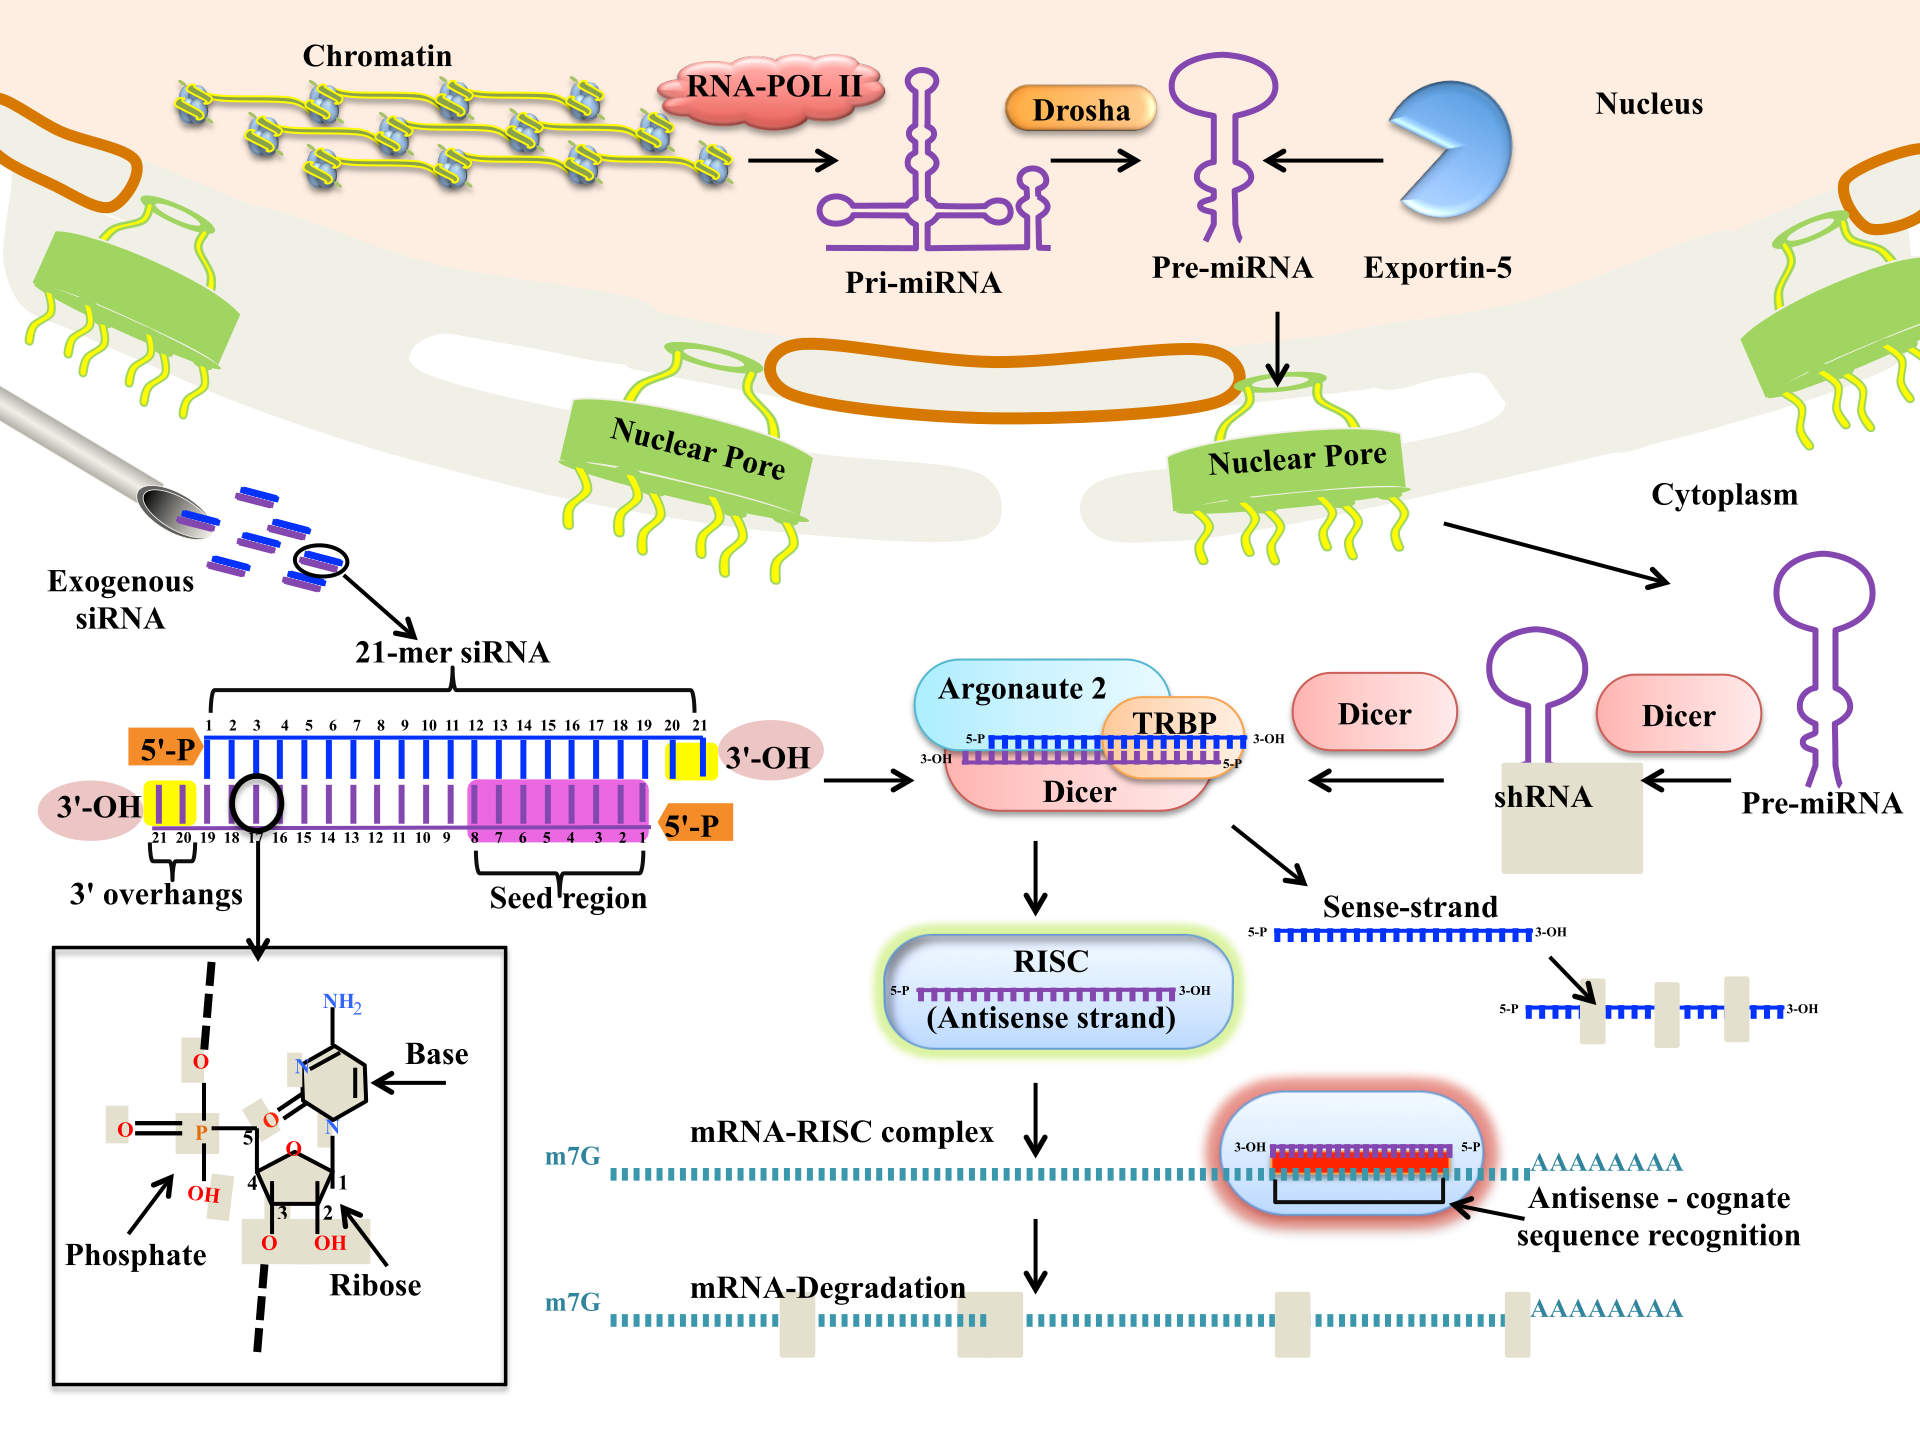
![Mekanisme siRNA: Dicer, RISC, dan pemotongan mRNA]()
Mekanisme siRNA dari dsRNA hingga pemotongan mRNA. Sumber: Wikimedia Commons.
miRNA vs siRNA
| Asal |
Endogen, gen jepit rambut |
dsRNA panjang, virus, atau sintetik |
| Prosesor |
Drosha lalu Dicer |
Dicer, atau tanpa bila sintetik |
| Komplementaritas |
Parsial, terpusat di seed |
Penuh sepanjang pemandu |
| Efektor |
AGO1 sampai AGO4 dan GW182 |
AGO2 (slicer) |
| Mekanisme |
Deadenilasi dan degradasi |
Pemotongan endonukleolitik |
| Jumlah target |
Ratusan |
Idealnya satu |
Batasnya tidak mutlak: siRNA yang seed-nya cocok sebagian dapat berperilaku seperti miRNA dan menimbulkan efek off-target.
Mengapa siRNA dibuat 21 nukleotida
- Pada cacing dan lalat, dsRNA panjang dapat dipakai langsung
- Pada sel mamalia, dsRNA lebih dari sekitar 30 pb memicu respons imun antivirus: aktivasi PKR, interferon tipe I, dan penghentian translasi global
- Elbashir et al. (2001): siRNA sintetik 21 nt dengan overhang 2 nt di ujung 3’ membungkam gen secara spesifik tanpa memicu respons interferon
- Temuan ini membuka jalan RNAi sebagai alat riset dan sebagai obat pada mamalia
RNAi sebagai alat riset
siRNA vs shRNA
- siRNA sintetik: ditransfeksikan, efek sementara beberapa hari
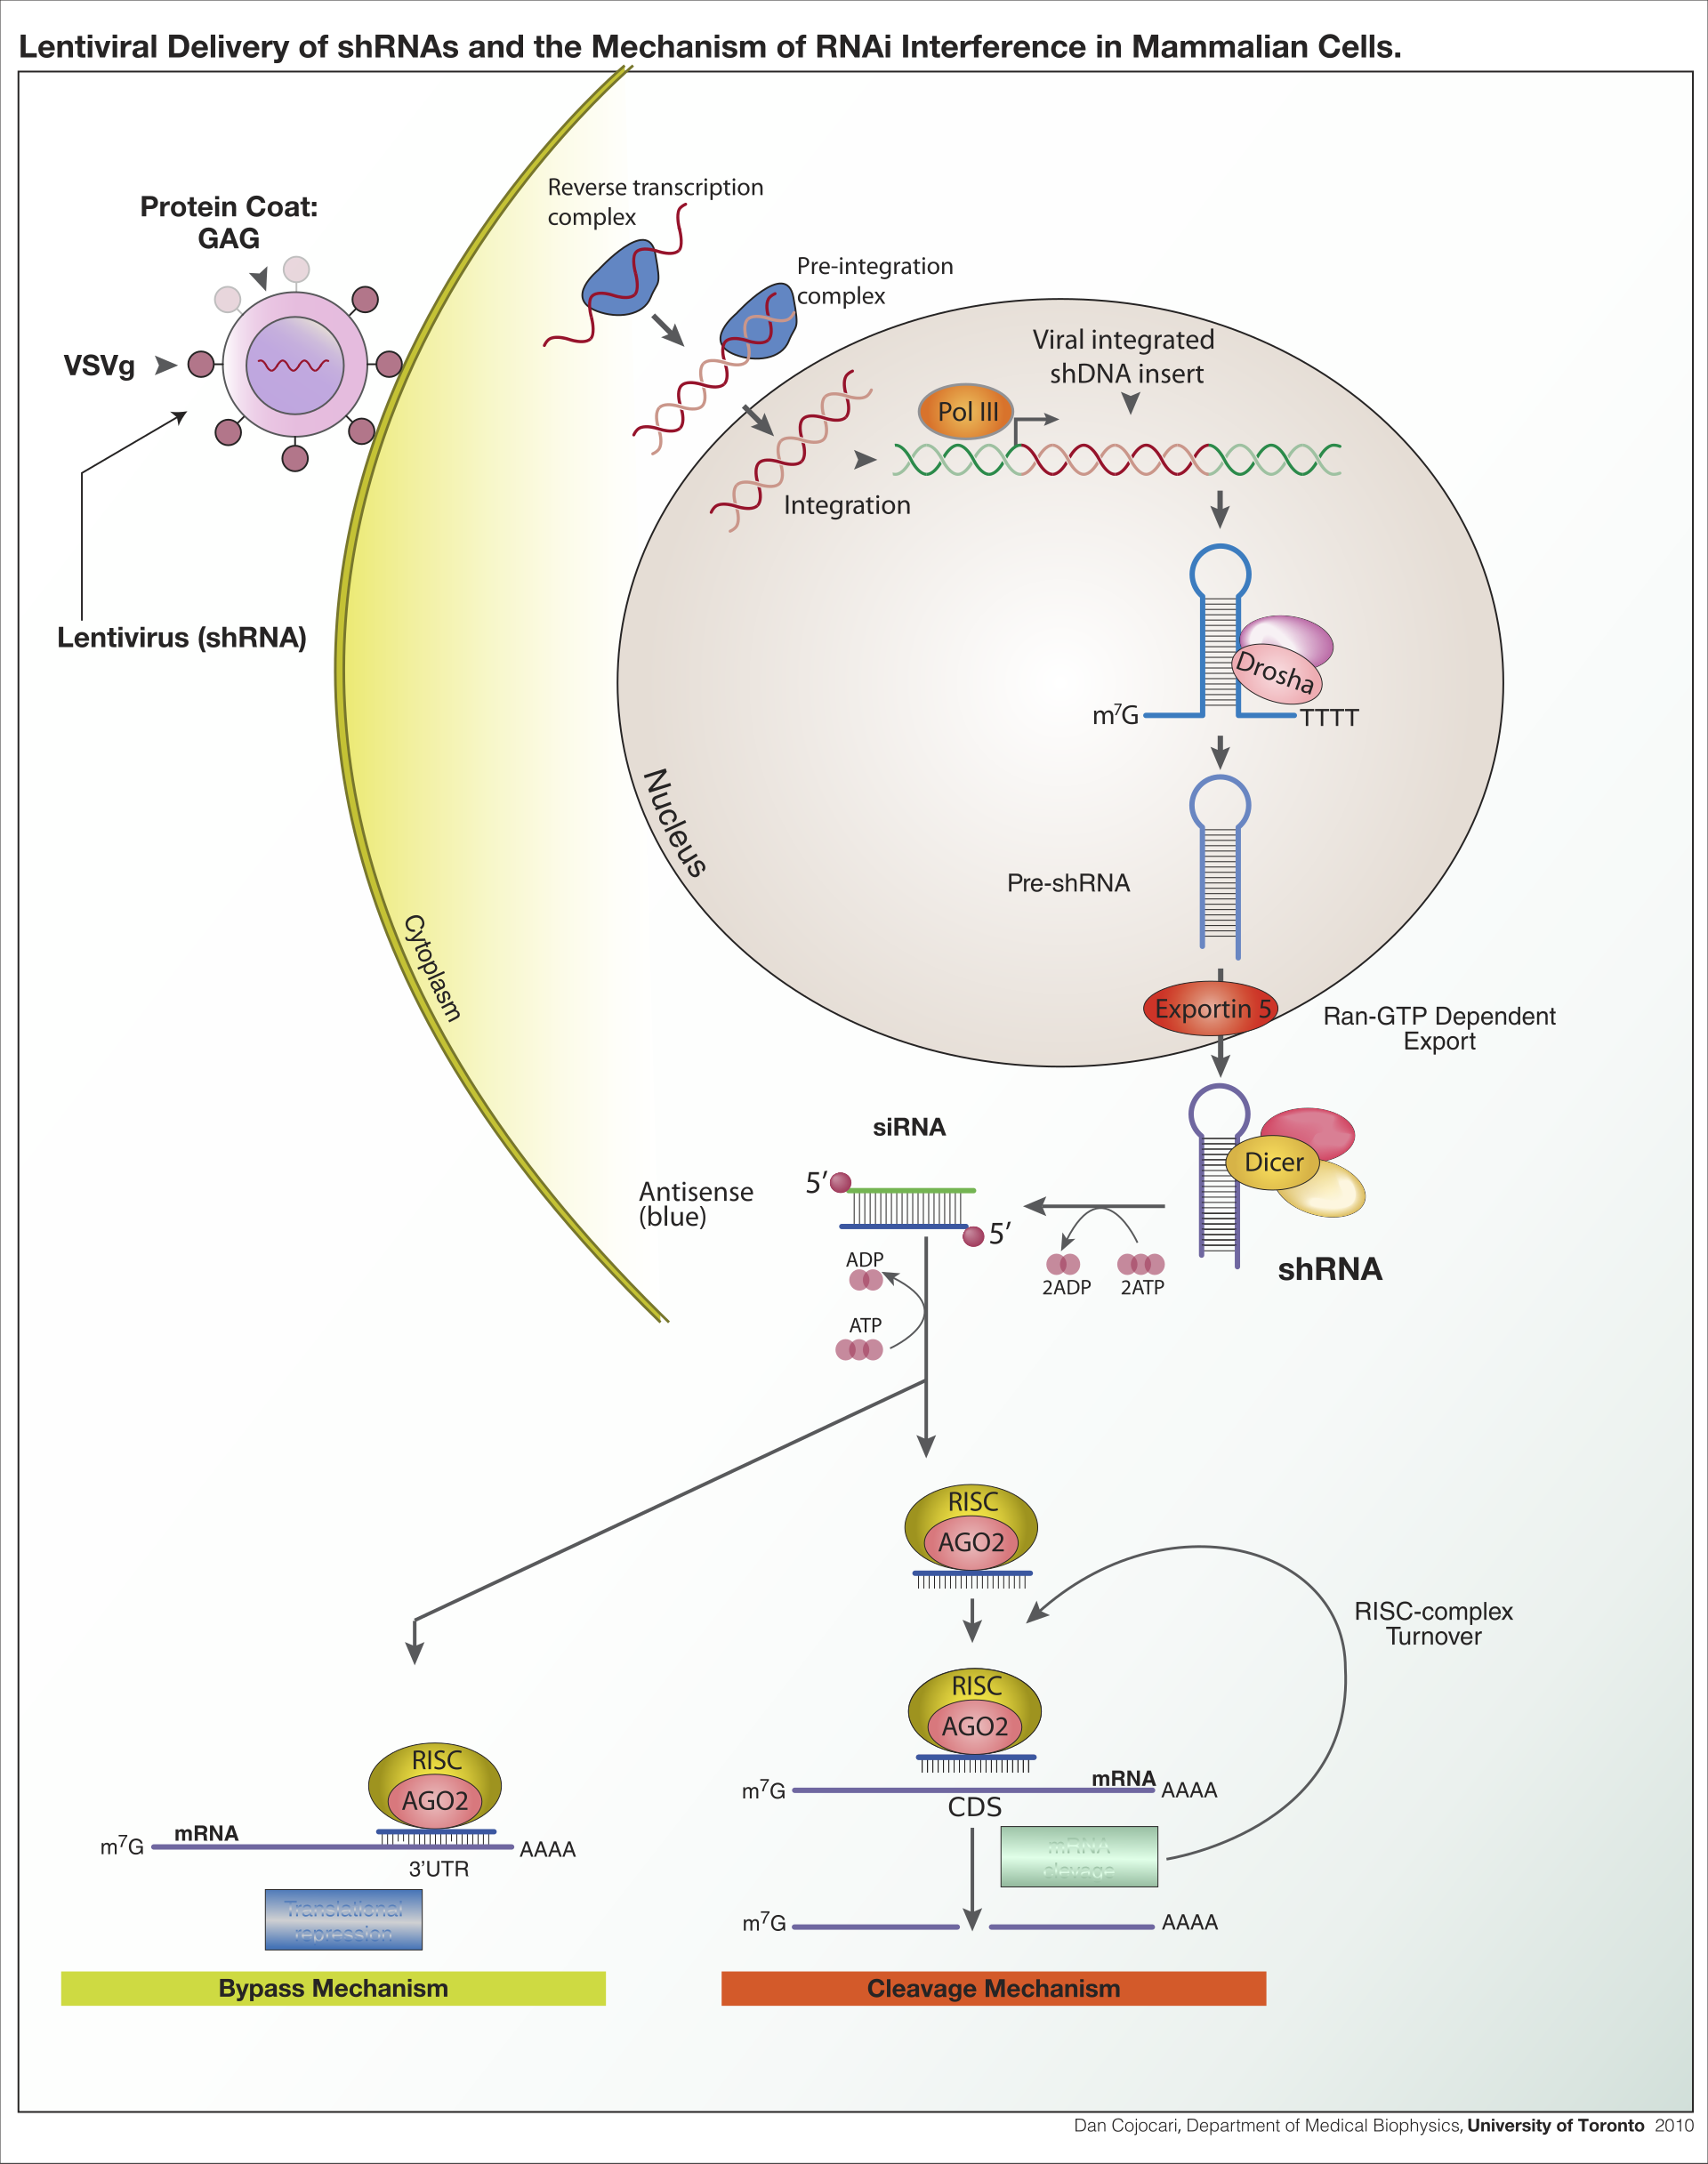
- shRNA: disandi vektor (misalnya lentivirus), diproses seperti miRNA, efek stabil jangka panjang
Kontrol yang wajib ada
- siRNA non-targeting sebagai kontrol negatif
- Minimal dua siRNA independen untuk gen yang sama
- Rescue: ekspresi ulang gen yang kebal siRNA mengembalikan fenotipe
- Validasi di tingkat mRNA (RT-qPCR) dan protein (Western blot)
![Penghantaran shRNA dengan vektor lentivirus]()
Penghantaran shRNA dengan vektor lentivirus. Sumber: Wikimedia Commons.
Knockdown, knockout, dan knock-in
| RNAi (knockdown) |
mRNA |
Sementara atau stabil, dapat dibalik |
Biasanya masih ada |
| CRISPR (knockout) |
DNA |
Permanen |
Idealnya nol |
| CRISPRi |
Transkripsi |
Dapat dibalik, tanpa memotong DNA |
Tertekan kuat |
Pilihan bergantung pertanyaan penelitian: gen esensial sering lebih cocok dikaji dengan knockdown parsial, karena knockout total mematikan sel. Bandingkan dengan CRISPR pada Pertemuan 8.
lncRNA: empat pola kerja
- Definisi operasional: transkrip lebih dari 200 nt yang tidak diterjemahkan menjadi protein; batasan ini masih diperdebatkan (Mattick et al., 2023)
- Umumnya diekspresikan rendah tetapi sangat spesifik jaringan
Empat pola kerja yang lazim:
- Sinyal: kehadirannya menandai keadaan atau lokasi tertentu
- Umpan (decoy): menangkap protein atau miRNA agar tidak bekerja
- Pemandu (guide): membawa kompleks pengatur ke lokasi genom tertentu
- Perancah (scaffold): menyatukan beberapa protein menjadi satu kompleks
Contoh lncRNA: XIST
XIST bekerja in cis pada kromosom X tempat ia ditranskripsi:
- Menyelubungi kromosom X yang akan dinonaktifkan
- Repetisi A merekrut SPEN, yang merekrut HDAC dan mematikan transkripsi
- Merekrut kompleks Polycomb yang memasang H3K27me3
- Tahap akhir: metilasi DNA pada CpG island mengunci keadaan bungkam
Inilah urutan yang disinggung di Pertemuan 2: RNA memulai, histon mengikuti, metilasi DNA mengunci.
Satu molekul RNA dapat mengatur seluruh kromosom. Ini menunjukkan RNA bukan sekadar perantara informasi, melainkan pengatur struktural.
HOTAIR adalah contoh lncRNA yang bekerja in trans: ditranskripsi dari satu lokus HOX namun memengaruhi lokus lain.
circRNA dan spons miRNA
- circRNA terbentuk lewat back-splicing: ujung 3’ ekson menyambung ke ujung 5’ ekson di hulu, menghasilkan lingkaran tanpa ujung bebas
- Karena tanpa ujung bebas, circRNA tahan terhadap eksonuklease sehingga relatif stabil
- Sebagian bertindak sebagai spons miRNA: mengandung banyak situs pengikatan sehingga menahan miRNA dan menaikkan ekspresi target miRNA tersebut
- Contoh klasik: CDR1as (ciRS-7) yang mengikat miR-7
Catatan kritis: hanya sebagian kecil circRNA yang jumlahnya cukup banyak untuk benar-benar berfungsi sebagai spons. Klaim fungsi spons perlu bukti stoikiometri.
miRNA sebagai biomarker sirkulasi
- miRNA ditemukan stabil di plasma, serum, urin, dan saliva
- Stabilitasnya berasal dari perlindungan: terbungkus eksosom, atau terikat protein AGO2 dan HDL
- Karena itu miRNA sirkulasi menarik sebagai biomarker non-invasif untuk kanker, penyakit jantung, dan penyakit hati
- Tantangan: belum ada standardisasi pra-analitik (hemolisis sangat mengganggu), pemilihan gen referensi masih diperdebatkan, dan hasil antar-laboratorium sering tidak konsisten
Kaitkan dengan biopsi cair berbasis metilasi pada Pertemuan 2: keduanya menghadapi masalah standardisasi yang serupa.
Dari mekanisme ke obat: siRNA terapeutik
Dua hambatan utama penghantaran, dan solusinya:
- Stabilitas: RNA telanjang cepat didegradasi nuklease dan disaring ginjal. Solusinya modifikasi kimia: 2’-O-metil, 2’-fluoro, dan ikatan fosforotioat
- Penargetan sel: konjugat GalNAc (N-asetilgalaktosamin) berikatan dengan reseptor asialoglikoprotein yang berlimpah di hepatosit, sehingga obat terarah ke hati; alternatif lain nanopartikel lipid (LNP)
Karena itu hampir semua obat siRNA yang disetujui menyasar penyakit hati. Menjangkau organ lain masih menjadi tantangan utama.
Obat siRNA yang telah disetujui FDA
| Patisiran |
TTR |
Amiloidosis hATTR |
Nanopartikel lipid |
2018 |
| Givosiran |
ALAS1 |
Porfiria hepatik akut |
GalNAc |
2019 |
| Lumasiran |
HAO1 |
Hiperoksaluria primer tipe 1 |
GalNAc |
2020 |
| Inclisiran |
PCSK9 |
Hiperkolesterolemia |
GalNAc |
2021 |
| Vutrisiran |
TTR |
Amiloidosis hATTR |
GalNAc |
2022 |
| Nedosiran |
LDHA |
Hiperoksaluria primer tipe 1 |
GalNAc |
2023 |
| Fitusiran |
Antitrombin |
Hemofilia A dan B |
GalNAc |
2025 |
Disarikan dari Le QV, Shim G. (2026) Pharmaceutics 18:593, CC BY 4.0. Perhatikan: fitusiran memiliki peringatan kotak hitam FDA untuk kejadian trombotik.
Inclisiran: contoh kasus klinis
- Target: mRNA PCSK9 di hepatosit. PCSK9 mendegradasi reseptor LDL, sehingga menghambatnya menaikkan jumlah reseptor LDL dan menurunkan kolesterol LDL darah
- Konjugat GalNAc mengarahkan obat ke hati
- Keunggulan praktis: cukup dua kali suntik per tahun setelah dosis awal, karena RISC bekerja katalitik dan bertahan lama di hepatosit
- Bandingkan dengan statin harian atau antibodi anti-PCSK9 tiap dua minggu
Frekuensi dosis yang jarang ini adalah konsekuensi langsung dari mekanisme katalitik RISC yang dibahas di awal.
Ringkasan mekanistik
- miRNA: Pol II, Drosha/DGCR8, Exportin-5, Dicer, AGO, lalu GW182 dan deadenilasi
- Pengenalan target ditentukan seed (nt 2 sampai 8), sehingga satu miRNA menyasar ratusan mRNA
- siRNA berpasangan penuh dan dipotong AGO2 antara nt 10 dan 11, spesifik untuk satu target
- Batas 21 nt pada mamalia untuk menghindari respons interferon
- lncRNA bekerja sebagai sinyal, umpan, pemandu, dan perancah; XIST menghubungkan RNA, histon, dan metilasi DNA
- Modifikasi kimia dan konjugat GalNAc mengubah RNAi menjadi obat, terutama untuk penyakit hati
Rujukan: review dan artikel terbaru
- Kim H, Lee YY, Kim VN. (2025). The biogenesis and regulation of animal microRNAs. Nat Rev Mol Cell Biol 26:276-296.
- Le QV, Shim G. (2026). Evolution of siRNA therapeutics: from mechanistic foundations to clinical expansion. Pharmaceutics 18:593.
- Mattick JS, et al. (2023). Long non-coding RNAs: definitions, functions, challenges and recommendations. Nat Rev Mol Cell Biol 24:430-447.
- Shang R, Lee S, Senavirathne G, Lai EC. (2023). microRNAs in action: biogenesis, function and regulation. Nat Rev Genet 24:816-833.
- O’Brien J, Hayder H, Zayed Y, Peng C. (2018). Overview of microRNA biogenesis, mechanisms of actions, and circulation. Front Endocrinol 9:402.
- Bartel DP. (2018). Metazoan microRNAs. Cell 173:20-51.
Rujukan: artikel klasik
- Lee RC, Feinbaum RL, Ambros V. (1993). The C. elegans heterochronic gene lin-4 encodes small RNAs with antisense complementarity to lin-14. Cell 75:843-854.
- Fire A, et al. (1998). Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature 391:806-811.
- Elbashir SM, et al. (2001). Duplexes of 21-nucleotide RNAs mediate RNA interference in cultured mammalian cells. Nature 411:494-498.
- Guo H, Ingolia NT, Weissman JS, Bartel DP. (2010). Mammalian microRNAs predominantly act to decrease target mRNA levels. Nature 466:835-840.
- Alberts B, et al. (2022). Molecular Biology of the Cell, 7th ed. Garland Science. Bab 7.
Gambar Wikimedia Commons: penulis dan lisensi tiap berkas tercatat di img/CREDITS.md.